
Роль Fcγ-рецепторов в реализации биологического действия С-реактивного белка на тучные клетки человека
The role of Fcγ-receptors in the biological action of C-reactive protein on human mast cells- DOI
- 10.5922/ATB-2026-2-1-2
- Страницы / Pages
- 17-45
- Для цитирования
- Трулев А. С., Кутукова Н. А., Кудрявцев И. В. Роль Fcγ-рецепторов в реализации биологического действия С-реактивного белка на тучные клетки человека. Современные направления в биомедицине. 2026;2(1):17—45. https://doi.org/10.5922/ATB-2026-2-1-2
- To cite
- Trulioff A. S., Kutukova N. A., Kudriavtsev I. V. The role of Fcγ-receptors in the biological action of C-reactive protein on human mast cells. Advanced Targets in Biomedicine. 2026;2(1):17–45. https://doi.org/10.5922/ATB-2026-2-1-2
Аннотация
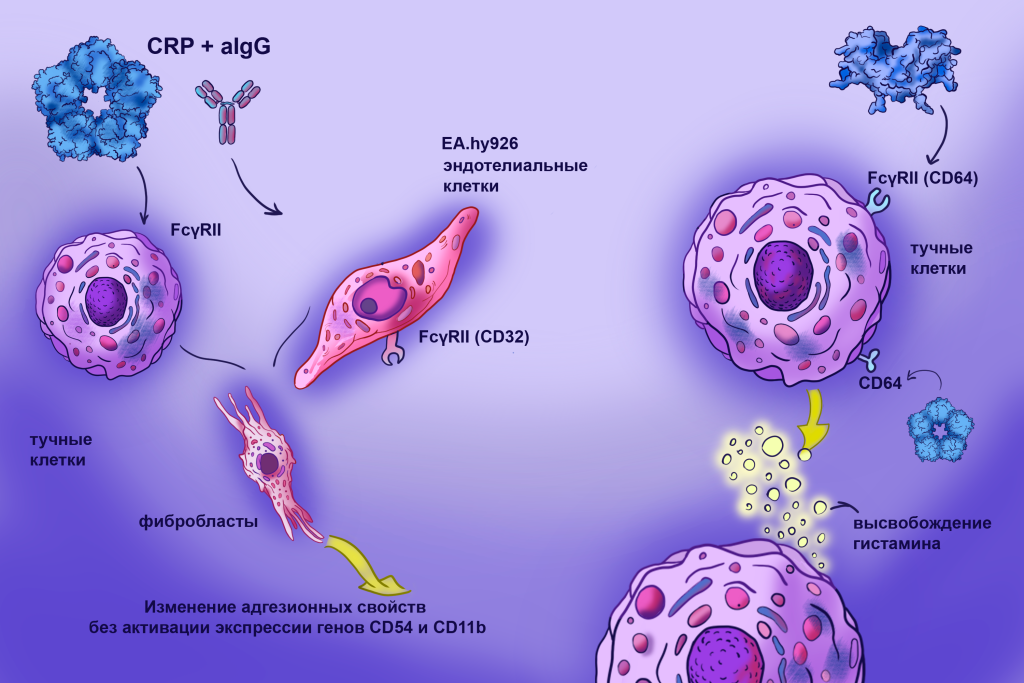
Современные данные убедительно подтверждают ключевую роль тучных клеток в запуске провоспалительных реакций и регенераторные свойства фибробластов на этапе разрешения воспалительного процесса. Тем не менее вопросы их синергии в острой фазе воспалительного ответа, включая влияние белков острой фазы на межклеточную коммуникацию, остаются малоисследованными. В рамках настоящей работы при помощи проточной цитометрии и количественной флюоресцентной оценки клеточной адгезии мы смогли показать, что стимуляция Fcγ-рецепторнов тучных клеток линии HMC-1 специфическими лигандами (C-реактивный белок, агрегированные иммуноглобулины G, сывороточный P-компонент амилоида) приводит к усилению адгезивных свойств клеток к элементам стромы — фибробластам и межнеклеточному матриксу. Примечательно, что нативные тучные клетки HMC-1 не демонстрируют секреторного ответа на стимуляцию C-реактивного белка в виде высвобождения гистамина. Способность к запуску дегрануляционной реакции с выделением гистамина при контакте с C-реактивным белком связана с экспрессией высокоаффинных FcγRI-рецепторов, индуцируемой на мембране тучных клеток под действием IFNγ. Эти данные раскрывают новые аспекты регуляции межклеточных взаимодействий в условиях острого воспаления, подчеркивая роль цитокиновой модуляции в реализации эффекторных функций иммунокомпетентных клеток.
Abstract
Полный текст
Введение
Тучные клетки (мастоциты) (ТК) представляют собой полифункциональные элементы иммунной системы, участвующие не только в аллергических реакциях, но и в широком спектре физиологических и патологических процессов. Эволюционно эти клетки возникли рано: их аналоги обнаружены у асцидий и членистоногих, где они выполняют функции, сходные с тучными клетками млекопитающих [1]. Современные исследования расширили представления о роли мастоцитов, подтвердив их участие в противовирусном и антибактериальном ответе, формировании иммунной толерантности, ангиогенезе и репарации тканей. Их дисфункция ассоциирована с развитием ревматоидного артрита [2], рассеянного склероза [3] и фиброзных заболеваний [5].
Локализация мастоцитов в организме имеет выраженную специфику. Они концентрируются вблизи эпителиальных барьеров — кожи, слизистых желудочно-кишечного тракта и воздухоносных путей. Примечательно, что их распределение подчиняется двум закономерностям: плотность возрастает ближе к эпидермису и в дистальных зонах (кожа лица, ладоней), что коррелирует с повышенным риском контакта с патогенами [6]. В отличие от других гемопоэтических клеток зрелые мастоциты не циркулируют в крови, а резидентно закрепляются в тканях. Механизмы их миграции остаются предметом дискуссий, однако ключевую роль в этом процессе играют взаимодействия адгезивных молекул с компонентами внеклеточного матрикса [7].
Фибробласты как основные стромальные клетки соединительной ткани формируют микроокружение для созревания и функционирования мастоцитов. Активация последних инициирует каскад воспалительных реакций: через выделение медиаторов (гистамин, цитокины) усиливается сосудистая проницаемость, что клинически проявляется классической тетрадой воспаления: гиперемией, отеком, гипертермией и болью [8].
Особый интерес представляют пентраксины — белки острой фазы, включая С-реактивный белок (CRP) и сывороточный амилоидный P-компонент (SAP). Эти олигомерные структуры выполняют опсонизирующую функцию, связывают апоптотические клетки и регулируют активность комплемента [9]. Динамика их синтеза при воспалении различается: уровень CRP возрастает в 100—1000 раз (до 200 мкг/мл), тогда как концентрация SAP колеблется незначительно (около 30 мкг/мл) [10]. CRP взаимодействует с широким спектром лигандов, включая фибронектин, ламинин и патоген-ассоциированные молекулы, что указывает на его роль в модуляции межклеточных взаимодействий [11].
Несмотря на обширные данные о провоспалительной активности мастоцитов и репаративной функции фибробластов, их кооперация на ранних стадиях воспаления изучена недостаточно. Дискуссионным остается вопрос о рецепторных механизмах, опосредующих влияние CRP на клетки соединительной ткани.
Цель исследования
Целью настоящего исследования стало изучение роли CRP в регуляции взаимодействий мастоцитов с фибробластами и эндотелием, а также оценка участия Fcγ-рецепторов в этих процессах.
Материалы и методы
Культуры клеток
Линия тучных клеток НМС-1 были любезно предоставлены профессором Дж. Г. Баттерфилдом (Mayo Clinic, Рочестер, США). Клетки культивировали в Iscove’s Modified Dulbecco’s Medium (IMDM, «Биолот», Санкт-Петербург) с добавлением 10%- ной фетальной телячьей сыворотки (FCS), гентамицина (40 мкг/ мл) и 1,2 мМ монотиоглицерола. Пересев клеток производили каждые 3—4 дня при достижении плотности клеток 1,5—2 · 106 клеток/мл.
Фибробласты человека были любезно предоставлены Д. А. Могиленко. Фибробласты были выделены из крайней плоти здоровых доноров. EA.hy926 — перевиваемая линия клеток эндотелия человека была любезно предоставлена доктором К.-Дж.С. Эджелл (Университет Северной Калифорнии, США). Как эндотелиальные клетки EA.hy926, так и фибробласты — адгезионные культуры. Клетки культивировали в среде DMEM (Sigma) с добавлением 10%-ного ЭТС (Gibco), 40 мкг/мл сульфата гентамицина («Биолот», Санкт-Петербург, РФ) и 2 мМ L-глутамина («Биолот», Санкт-Петербург, РФ). Пересев производили по достижении конфлюэнтного монослоя, 2—3 раза в неделю. Для дезинтеграции монослоя использовали раствор трипсина-версена 1 : 1 («Биолот», Санкт-Петербург, РФ).
Все использованные в работе клеточные культуры инкубировали в полистироловых флаконах объемом 50 мл («Orange Scientific», Бельгия) при 37 °С в присутствии 5%- ного СО2.
Оценка токсического эффекта исследуемых препаратов на клетки НМС-1
В работе использовались препараты CRP (Calbiochem) и агрегированного нагреванием при 63 °С IgG (ИмТэк). Производили тестирование возможного влияния различных доз препаратов, применяемых в экспериментах, на жизнеспособность клеток линии HMC-1. Оценку цитотоксичности проводили при помощи проточной цитометрии по появлению клеток с гиподиплоидным набором ДНК при помощи окраски клеток йодистым пропидием. Препараты CRP и aIgG исследовали в финальных концентрациях 5, 10 и 50 мкг/мл.
По завершении инкубации клеток с исследуемыми веществами клетки отмывали избытком забуференного физиологического раствора (ЗФР). Полученный осадок ресуспендировали в 100 мкл ЗФР и добавляли 900 мкл 70° этанола, охлажденного до – 20 °С. Непосредственно перед анализом клетки осаждали центрифугированием (7 мин при 300 g) и переводили в ЗФР. После этого в образцы вносили 0,1%-ный раствор йодистого пропидия и проводили окраску в течение 30 мин в темноте при комнатной температуре. По завершении инкубации проводили цитофлуорометрический учет на проточном цитофлуориметре Navios (Beckman Coulter Inc., США).
Проточная цитометрия
Оценку экспрессии различных поверхностных молекул на клетках производили на проточном цитометре Navios (Beckman-Coulter) с использованием моноклональных антител. Для каждого из моноклональных антител (CD16, CD32, CD64, CD11b и CD54) были использованы соответствующие изотипические контроли. Все антитела и изотипические контроли, использованные в данной работе, были производства компании Beckman Coulter Inc. (США). Окраску поверхностных антигенов антителами производили в соответствии с инструкциями производителя. Результаты экспериментов выражали в условных единицах MFI (среднее геометрическое), характеризующих среднюю интенсивность флюоресценции.
Оценка активации тучных клеток по выходу гистамина методом Шора
Для оценки способности лигандов Fcγ-рецепторов вызывать дегрануляцию тучных клеток отбирали нужное количество клеток, отмывали раствором Хэнкса (Биолот) и ресуспендировали в растворе Хэнкса, содержащем 0,1 % бычьего сывороточного альбумина (БСА, Sigma). Затем к клеткам добавляли интересующие нас вещества, в качестве положительного контроля использовали вещество 48/80 (Sigma) в концентрации 20 мкг/мл. После 30-минутной инкубации при 37 °С клетки осаждали центрифугированием (5 мин 300 g), надосадочную жидкость отбирали и замораживали при – 20 °С. Для тотального выхода гистамина из тучных клеток (ТК) клетки разводили деионизированной водой и разрушали замораживанием / оттаиванием.
Количество высвободившегося гистамина определяли модифицированным методом Шора. Результат выражали в виде отношения RFU в надосадочной жидкости к сумме RFU в надосадке и RFU оставшегося в клетках гистамина.
Оценка адгезии клеток друг к другу
Интенсивность адгезии клеток линии НМС-1 к адгезионным культурам определяли следующим образом: в лунки 96-луночного планшета к монослою адгезионных клеток добавляли клетки линии HMC-1, предварительно меченые CFSE. Совместная инкубация меченных CFSE суспензионных клеток с монослоем Фб или эндотелиальных клеток продолжалась 30 мин, после чего монослой отмывали от неприкрепившихся клеток и производили учет реакции.
Если изучали влияние лигандов Fcγ-рецепторов на адгезивные свойства суспензионных клеток, то клетки стимулировали в течение суток изучаемым препаратом, после чего отмывали и метили CFSE. Если изучали изменение адгезивных свойств фибробластов или клеток EA.hy926 под действием стимуляторов, то вносили индукторы, разведенные в среде без эмбриональной телячьей сыворотки (ЭТС), с 1 % БСА за сутки до добавления клеток, меченых CFSE. Учет адгезии производили при помощи спектрофлюориметра при длине волны возбуждения 480, эмиссии — 535 нм. По яркости флюоресценции судили о количестве прикрепившихся клеток, то есть об интенсивности адгезии. Результат выражали в RFU.
При изучении адгезии клеток друг к другу в присутствии индукторов после мечения клеток CFSE их вносили в лунки к адгезионным клеткам в 50 мкл культуральной среды, после чего сразу же добавляли стимуляторы в 50 мкл той же среды.
Связывание С-реактивного белка c клетками
Мечение С-реактивного белка биотином
Для того чтобы пометить CRP биотином, дважды диализовали коммерческий препарат CRP против ЗФР. После чего к CRP добавляли 1%-ный раствор биотина (sulphosuccinimidyl-6[biotin]hexanoate (Sulpho-NHS-LS-Biotin), Pierce) в dH2O таким образом, что молярное отношение количества С-реактивного белка к количеству биотина было 1:20. После тридцатиминутной инкубации при комнатной температуре трижды диализовали меченый С-реактивный белок против ЗФР для удаления из раствора не связавшегося биотина; последний диализ проходил с добавлением 0,2 % азида натрия (Serva).
Связывание С-реактивного белка с тучными клетками линии НМС-1
Связывание CRP с ТК линии НМС-1 оценивали на проточном цитометре. Для этого ТК собирали, отмывали раствором Хэнкса, содержащим 0,1 % БСА и 0,2 % NaN3. Затем к клеткам добавляли меченый биотином CRP в различных концентрациях и инкубировали 30 мин при комнатной температуре. После этого дважды отмывали от несвязавшегося CRP, добавляли по 0,5 мкл раствора стрептавидина, меченого аллофикоцианином (APC), инкубировали в темноте при комнатной температуре в течение 15 мин. По окончании инкубации клетки трижды промывали ЗФР, содержащим 10%-ный ЭТС, и определяли интенсивность флюоресценции клеток на проточном цитометре.
Также проводили эксперименты по изучению конкуренции за связывание с клетками биотинилированного и немеченого CRP либо aIgG. В этих случаях к клеткам одновременно добавляли 50 мкг/мл меченного биотином CRP и различные концентрации немеченого CRP или aIgG, затем инкубировали в течение 30 мин, после чего отмывали, добавляли стрептавидин, меченый APC, и производили учет уровня флюоресценции клеток на проточном цитометре. Концентрация меченого биотином CRP была выбрана исходя из того, что в данной концентрации происходит связывание CRP с клетками хорошо отличимое от контроля, но еще без насыщения (рис. 1, а).
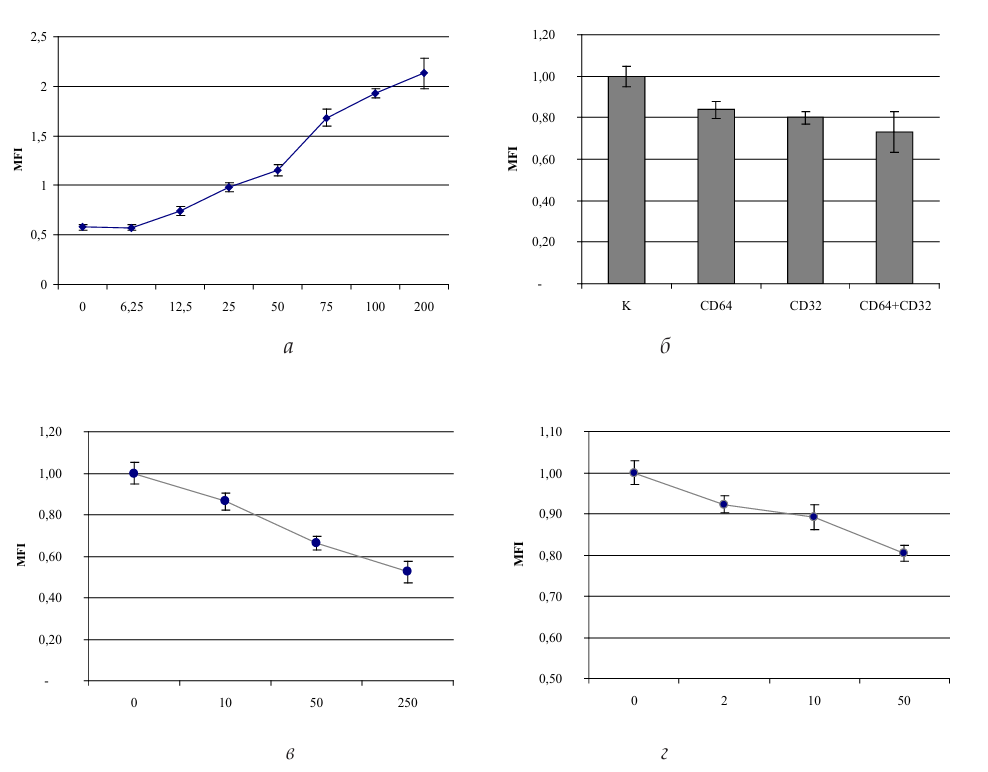
Рис. 1. Связывание С-реактивного белка с клетками линии НМС-1:
а — связывание CRP с клетками HMC-1, по оси абсцисс — концентрация CRP, мкг/мл, по оси ординат — уровень флюоресценции клеток, окрашенных стрептавидином-АРС, MFI; б — оценка специфичности связывания CRP с тучными клетками НМС-1: вытеснение меченого биотином CRP антителами к FcγR, по оси ординат — MFI; в — вытеснение меченого биотином CRP возрастающими концентрациями немеченого CRP, по оси абсцисс — концентрация немеченого CRP, мкг/мл, по оси ординат — MFI; г — оценка специфичности связывания CRP с тучными клетками НМС-1: вытеснение меченого биотином CRP возрастающими концентрациями aIgG, по оси абсцисс — концентрация aIgG, мкг/мл, по оси ординат — MFI
Fig. 1. Binding of C-reactive protein to HMC-1 cells:
a — CRP binding to HMC-1 cells; abscissa — CRP concentration, μg/ml; ordinate — fluorescence intensity of cells stained with streptavidin-APC, MFI. b — evaluation of the specificity of CRP binding to HMC-1 mast cells: displacement of biotin-labeled CRP by antibodies against FcγR; ordinate — MFI. c — displacement of biotin-labeled CRP by increasing concentrations of unlabeled CRP; abscissa — concentration of unlabeled CRP, μg/ml; ordinate — MFI. d — evaluation of the specificity of CRP binding to HMC-1 mast cells: displacement of biotin-labeled CRP by increasing concentrations of aIgG; abscissa — concentration of aIgG, μg/ml; ordinate — MFI
Трансфекция
Для оценки активации NF-κB-сигнального пути тучные клетки HMC-1 трансфецировали плазмидами pNF-κBluc и pCMVL при помощи реагента «Lipofectamine 2000» (Invitrogen), согласно инструкции производителя. Плазмида pNF-κBluc представляла собой конструкцию, содержащую ген люциферазы (luc), сцепленный с минимальным синтетическим промотором, содержащим пять цис-элементов для белков NF-κB (Stratagene, США). Плазмида pCMVL содержала ген бета-галактозидазы, находящийся под промотором цитомегаловируса (CMV) человека. Плазмиды были выделены из бактериальных клеток E. coli методом щелочного лизиса. Через сутки после трансфекции проводили инкубацию клеток в течение 24 ч с CRP человека (Calbiochem MD Biochemicals), сывороточным Р-компонентом амилоида (SAP) человека (Calbiochem) и агрегированным IgG человека (Имтэк, Москва). После окончания инкубации со стимуляторами клетки трижды отмывали ЗФР, собирали и лизировали в 20 мкл лизирующего буфера («Promega»).
Статистическая обработка
Статистическую обработку нормально распределенных данных проводили с помощью пакета программ «MS Excel 2010» (Microsoft, США). Анализ характера распределения данных проверяли по критериям Шапиро — Уилка и Колмогорова — Смирнова. Результаты представляли в виде среднего арифметического и его стандартной ошибки (M ± m). Значимость различий между группами оценивали в ходе однофакторного дисперсионного анализа (ANOVA Уэлча). Для анализа множественных сравнений использовали апостериорный тест Даннета (при сопоставлении с контрольной группой) и тест Тамхейна Т2 (для всех попарных сравнений). Достоверными считали различия при уровне значимости p < 0,05.
Результаты
1. Исследование токсического эффекта различных доз препаратов С-реактивного белка и агрегированного IgG человека
на клетки перевиваемой линии HMC-1
В рамках исследования выполнены эксперименты, направленные на оценку потенциальной цитотоксичности С-реактивного белка (CRP) и агрегированных человеческих IgG-антител (aIgG) в диапазоне концентраций 5—50 мкг/мл. В качестве отрицательного контроля применяли бычий сывороточный альбумин в концентрации 100 мкг/мл. Согласно данным, представленным в таблице 1, 24-часовое воздействие исследуемых лигандов Fcγ-рецепторов не привело к статистически значимому увеличению апоптотической активности клеток HMC-1. Это свидетельствует об отсутствии прямого токсического действия CRP и aIgG на клеточную жизнеспособность в выбранных концентрациях. Следовательно, наблюдаемые в дальнейших экспериментах ингибирующие эффекты нельзя объяснить неспецифической гибелью клеток посредством некроза или апоптоза.
Таблица 1
Результаты исследования токсического эффекта
различных доз CRP и aIgG на клетки HMC-1
Table 1
Toxic effect of different doses of CRP and aIgG on HMC-1 cells
Стимулятор | Клетки, несущие гиподиплоидный набор ДНК, % |
Контроль: БСА, 100 нг/мл | 7,9 ± 1,5 |
CRP, 5 мкг/мл | 6,2 ± 2,1 |
CRP, 10 мкг/мл | 6,9 ± 3,5 |
CRP, 50 мкг/мл | 7,0 ± 1,2 |
aIgG, 5 мкг/мл | 7,7 ± 1,4 |
aIgG, 10 мкг/мл | 6,3 ± 3,6 |
aIgG, 50 мкг/мл | 8,3 ± 2,6 |
Примечание: Данные представлены в виде M ± m; n = 6.
Note: Data are presented as M ± m; n = 6.
2. Экспрессия Fcγ-рецепторов на клетках исследуемых линий
Методом проточной цитофлуориметрии проведен анализ поверхностных маркеров клеток. Было установлено, что клетки линии HMC-1 характеризуются выраженной экспрессией CD32 (FcγRII). Умеренные уровни CD64 (FcγRI) выявлены на их поверхности, в то время как CD16 (FcγRIII) отсутствует (рис. 2).
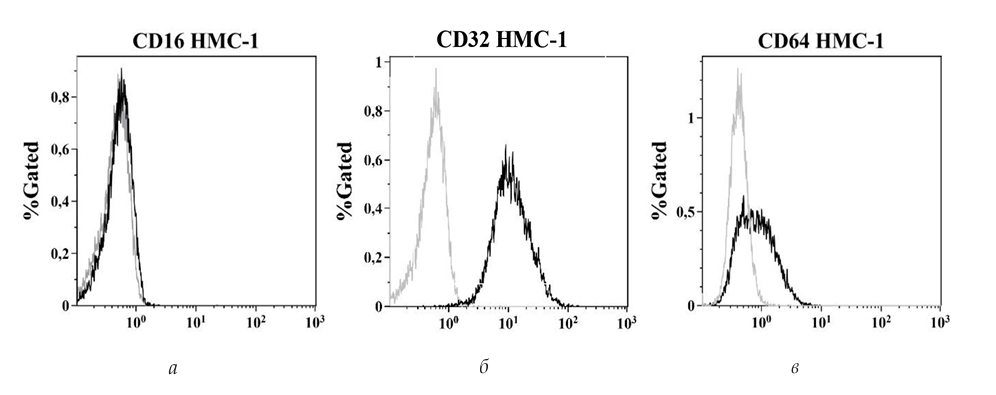
Рис. 2. Экспрессия Fcγ-рецепторов клетками НМС-1:
а — связывание клеток НМС-1 с антителами против СD16 (FcγRIII);
б — связывание клеток НМС-1 с антителами против CD32 (FcγRII);
в — связывание клеток НМС-1 с антителами против CD64 (FcγRI)
Примечание: серым цветом обозначен уровень связывания клеток с антителами изотипического контроля, черным — уровень связывания антител против соответствующих Fcγ-рецепторов. По оси абсцисс уровень флюоресценции в MFI; по оси ординат — количество клеток.
Fig. 2. Expression of Fcγ receptors by HMC-1 cells:
a — binding of HMC-1 cells to anti-CD16 antibodies (FcγRIII);
b — binding of HMC-1 cells to anti-CD32 antibodies (FcγRII);
c — binding of HMC-1 cells to anti-CD64 antibodies (FcγRI)
Note: gray indicates the level of cell binding to isotype control antibodies; black indicates binding of antibodies against the corresponding Fcγ receptors. The abscissa shows fluorescence intensity (MFI); the ordinate shows cell number.
3. Влияние IFNγ на экспрессию Fcγ-рецепторов клетками линии НМС-1
Исследования выявили, что инкубация клеток HMC-1 с интерфероном-гамма (IFNγ) индуцирует повышение уровня экспрессии высокоаффинного рецептора CD64 (FcγRI). Максимальная экспрессия наблюдалась через 24 ч после стимуляции (рис. 3, а). Эффект IFNγ был дозозависимым: при 1 нг/мл изменений не зафиксировано, тогда как 10 нг/ мл вызывали увеличение экспрессии CD64 на 20 %, а 100 нг/мл — на 28 %. Дальнейшее повышение дозы цитокина (до 1000 нг/ мл) не приводило к усилению ответа, что свидетельствует о достижении плато (рис. 3, б).
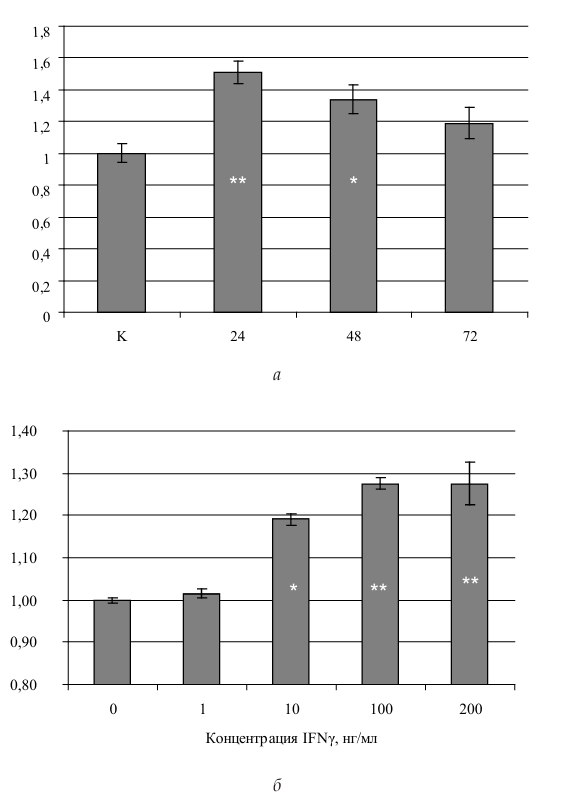
Рис. 3. Экспрессия FcγRI тучными клетками линии НМС-1 под действием IFNγ:
а — влияние продолжительности стимуляции. По оси абсцисс — продолжительность инкубации клеток с IFNγ (15 нг/мл), часов. По оси ординат — уровень флюоресценции клеток, окрашенных антителами против CD64, конъюгированными с FITC (MFI);
б — зависимость экспрессии FcγRI на клетках линии НМС-1 от концентрации IFNγ.
По оси абсцисс — концентрация IFNγ, по оси ординат — уровень флюоресценции клеток, окрашенных антителами против CD64, конъюгированными с FITC (MFI)
Примечание: достоверность различий с контролем: * — p < 0,05, ** — p < 0,01, *** — p < 0,001.
Fig. 3. FcγRI expression by HMC-1 mast cells in response to IFNγ: a — effect of stimulation duration. Abscissa — duration of cell incubation with IFNγ (15 ng/ml), hours;
ordinate — fluorescence intensity of cells stained with FITC-conjugated anti-CD64 antibodies (MFI).
b — dependence of FcγRI expression on IFNγ concentration. Abscissa — IFNγ concentration; ordinate — fluorescence intensity of cells stained with FITC-conjugated
anti-CD64 antibodies (MFI)
Note: significance of differences from control: * — p < 0.05, ** — p < 0.01, *** — p < 0.001.
Воздействие IFNγ не оказывало значимого влияния на экспрессию низкоаффинных рецепторов CD32 (FcγRII) и CD16 (FcγRIII) (рис. 4, а, б).
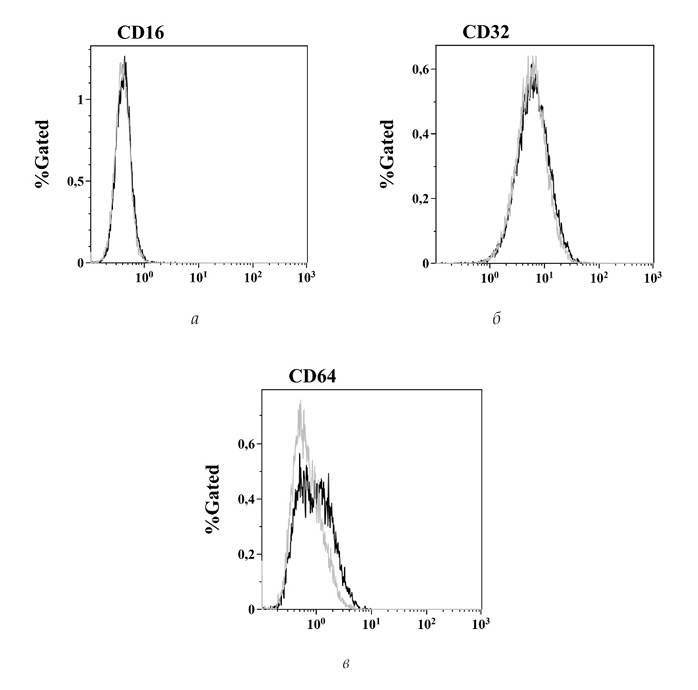
Рис. 4. Экспрессия Fcγ-рецепторов клетками НМС-1. Влияние IFNγ:
а — экспрессия на клетках НМС-1 CD16 (FcγRIII);
б — экспрессия на клетках НМС-1 CD32 (FcγRII);
в — экспрессия на клетках НМС-1 CD64 (FcγRI). Серым цветом обозначен уровень связывания антител против соответствующих Fcγ-рецепторов с интактными клетками,
черным — связывания антител с клетками, активированными IFNγ
Примечание: по оси абсцисс уровень флюоресценции (MFI), по оси ординат — количество клеток.
Fig. 4. Expression of Fcγ receptors by HMC-1 cells. Effect of IFNγ:
a — expression of CD16 (FcγRIII) on HMC-1 cells; b — expression of CD32 (FcγRII) on HMC-1 cells; c — expression of CD64 (FcγRI) on HMC-1 cells. Binding of antibodies against the corresponding Fcγ receptors to intact cells is shown in gray; binding to IFNγ-activated cells is shown in black
Note: the abscissa shows fluorescence intensity (MFI); the ordinate shows cell number.
4. Связывание С-реактивного белка с тучными клетками линии НМС-1
Наши экспериментальные данные продемонстрировали способность С-реактивного белка связываться с тучными клетками линии НМС-1 (рис. 5). Интересно, что данный процесс не требовал присутствия ионов Ca2+ или Mg2+ в среде, о чем свидетельствуют результаты, представленные в таблице 2.
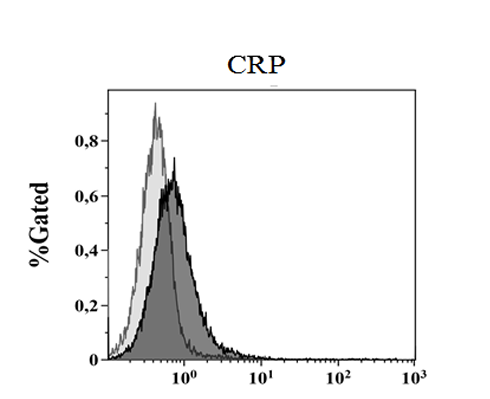
Рис. 5. Связывание С-реактивного белка с клетками линии НМС-1.
С-реактивный белок был помечен биотином и добавлен к клеткам
в концентрации 100 мкг/мл, после 30-минутной инкубации
была произведена отмывка от несвязавшегося белка
и добавлен стрептавидин, конъюгированный
с аллофикоцианином (APC) (темная гистограмма);
светлая гистограмма — к клеткам был добавлен стрептавидин-АРС
без предварительной инкубации с CRP (контроль)
Примечание: по оси абсцисс — уровень флуоресценции (MFI), по оси ординат — число клеток.
Fig. 5. Binding of C-reactive protein to HMC-1 cells.
C-reactive protein was labeled with biotin
and added to the cells at a concentration of 100 μg/ml; after a 30-minute incubation,
unbound protein was washed off and APC-conjugated streptavidin was added
(dark histogram); the light histogram shows streptavidin-APC added
to cells without prior incubation with CRP (control)
Note: the abscissa shows fluorescence intensity (MFI); the ordinate shows cell number.
Таблица 2
Связывание CRP с тучными клетками НМС-1: независимость
от наличия катионов и активации клеток IFNγ
Table 2
CRP binding to HMC-1 mast cells: independence from cation availability
and IFNγ cell activation
Состав среды | Контроль | После активации IFNγ |
DPBS с катионами Ca2+ и Mg2+ | 1,47 | 1,22 |
DPBS с 0,5 мМ ЭДТА | 1,4 | 1,35 |
Примечание: Приведена интенсивность флуоресценции клеток, связавших CRP. Данные представлены в MFI. DPBS — забуференный фосфатами раствор Дальбекко. Различия с контролем недостоверны (p > 0,05).
Note: Fluorescence intensity of cells that bound CRP is shown. Data are expressed in MFI. DPBS — Dulbecco’s phosphate-buffered saline. Differences from the control are not significant (p > 0.05).
Анализ показал отсутствие существенного влияния катионного состава среды и стимуляции интерфероном-гамма (IFNγ) на интенсивность связывания CRP с клеточной поверхностью (табл. 2). Для детекции взаимодействия использовали конъюгат стрептавидин-АРС с последующим цитофлуориметрическим анализом. Пороговая концентрация CRP, при которой регистрировалось специфическое связывание, составила 12 мкг/мл. В диапазоне 12—100 мкг/мл наблюдали линейную зависимость между дозой белка и силой взаимодействия. При превышении 100 мкг/мл процесс достигал плато, а дальнейшее увеличение концентрации не вызывало статистически значимого роста интенсивности флуоресценции (см. рис. 1, а).
Блокирование Fcγ-рецепторов антителами оказывало модулирующий эффект. Инкубация с моноклональными антителами к CD64 снижала активность связывания CRP на 16 %, тогда как использование антител к CD32 уменьшало показатели на 20 %. Комбинированная обработка ингибиторами обоих рецепторов приводила к аддитивному эффекту, снижая взаимодействие на 27 % (см. рис. 1, б).
Эксперименты с конкурентным ингибированием подтвердили селективность связывания С-реактивного белка с тучными клетками линии HMC-1. В системе, где меченный биотином CRP (50 мкг/мл) конкурировал с нативной формой белка, введение 10 мкг/мл немодифицированного CRP вызывало уменьшение флуоресцентного сигнала на 14 %. Увеличение концентрации конкурента до 50 мкг/мл усиливало ингибирующий эффект, снижая связывание на 33 %. Максимальное подавление взаимодействия (48 %) наблюдалось при пятикратном молярном избытке немеченого белка относительно меченой формы (см. рис. 1, в).
Дополнительные исследования выявили влияние агрегированного IgG (aIgG) на связывание CRP на поверхности тучных клеток линии HMC-1. Совместная инкубация клеток с aIgG и биотинилированным CRP вызывала дозозависимое уменьшение флуоресценции. При концентрации aIgG 2 мкг/мл подавление связывания составляло 8 %, тогда как 10 мкг/мл агрегированных иммуноглобулинов снижали показатель до 11 %. Максимальный ингибирующий эффект (20 %) регистрировался при 50 мкг/ мл aIgG, что свидетельствует о частичном конкурентном механизме взаимодействия (см. рис. 1, г).
5. Влияние С-реактивного белка на дегрануляцию тучных клеток
линии НМС-1
Проведенные исследования выявили, что в диапазоне концентраций 0,03—30 мкг/мл С-реактивный белок (CRP) не вызывал статистически значимого высвобождения гистамина из тучных клеток НМС-1 в отсутствие стимуляции. Однако в случае предварительной активации клеток интерфероном-гамма (IFNγ) наблюдалась выраженная дозозависимая модуляция дегрануляции.
Так, введение CRP в концентрациях 0,03 и 0,3 мкг/мл сопровождалось увеличением секреции гистамина на 18 и 20 % соответственно относительно контроля. При повышении дозы белка до 3 мкг/мл уровень дегрануляции возрастал на 33 %, а при концентрации CRP 30 мкг/мл секреция гистамина составляла 123 % от контрольных значений (рис. 6).
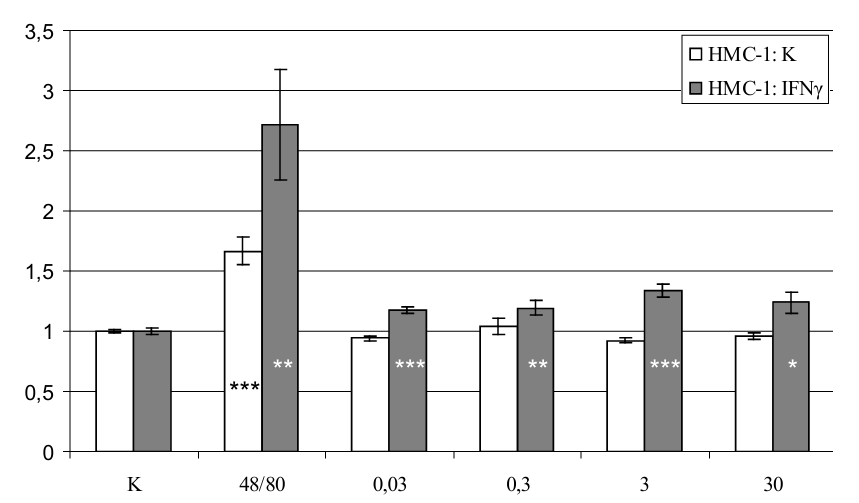
Рис. 6. Влияние CRP на выход гистамина из тучных клеток НМС-1:
зависимость от IFNγ.
Клетки НМС-1 были инкубированы сутки с 15 нг/мл IFNγ (столбцы серого цвета)
или без IFNγ (белые столбцы), после чего простимулированы CRP
в различных концентрациях. По оси абсцисс: К — ЗФР (негативный контроль),
48/80 — соединение 48/80 в концентрации 20 мкг/мл (позитивный контроль),
цифры — концентрация CRP, мкг/мл.
По оси ординат — индекс стимуляции (отношение выхода гистамина под действием стимулятора к негативному контролю). Уровень спонтанного выхода гистамина составлял
в контроле без обработки IFNγ 0,220 ± 0,01,а после обработки IFNγ — 0,195 ± 0,02 (p < 0,05)
Примечание: достоверность различий с контролем: * — p < 0,05, ** — p < 0,01, *** — p < 0,001.
Fig. 6. Effect of CRP on histamine release from HMC-1 mast cells: dependence on IFNγ.
HMC-1 cells were incubated for 24 hours with 15 ng/ml IFNγ (gray bars) or without IFNγ
(white bars) and then stimulated with CRP at various concentrations. Abscissa:
C — PBS (negative control); 48/80 — compound 48/80 at 20 μg/ml (positive control);
numbers — CRP concentration, μg/ml. Ordinate — stimulation index
(ratio of histamine release induced by the stimulator to the negative control).
The level of spontaneous histamine release was 0.220 ± 0.01 in the control without IFNγ
treatment and 0.195 ± 0.02 after IFNγ treatment (p < 0.05)
Note: significance of differences from control: * — p < 0.05, ** — p < 0.01, *** — p < 0.001.
6. Влияние лигандов Fcγ-рецепторов (С-реактивного белка, агрегированного IgG) на адгезивность клеток
6.1. Влияние С-реактивного белка и агрегированного IgG
на адгезивные свойства тучных клеток линии НМС-1
Экспериментальные данные продемонстрировали, что 24-часовая инкубация тучных клеток линии НМС-1 с С-реактивным белком вызывает статистически значимое усиление их способности к адгезии, зависящее от концентрации CRP. При использовании CRP в дозе 10 мкг/мл адгезия ТК к нестимулированным фибробластам возрастала на 27 % относительно контрольных значений. Увеличение концентрации белка до 50 мкг/ мл приводило к росту показателя на 54 %, причем различия между группами были статистически достоверны (p < 0,05) (рис. 7).
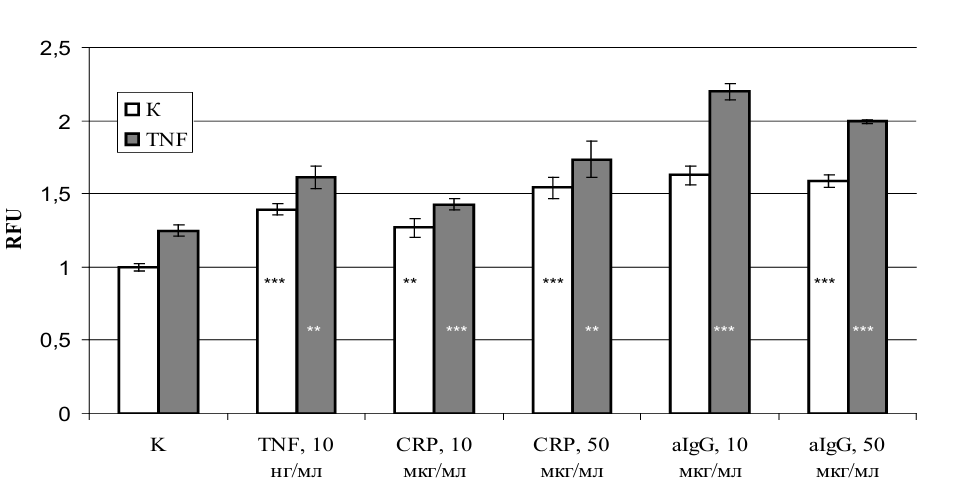
Рис. 7. Адгезия стимулированных тучных клеток линии НМС-1
к интактным или активированным TNF фибробластам
Примечание: белые столбцы — адгезия клеток НМС-1 к интактным Фб; серые — адгезия к Фб, активированным TNF (10 нг/мл). По оси абсцисс — активаторы тучных клеток и их концентрация, по оси ординат — индекс стимуляции. Различия с контролем достоверны: ** — p < 0,01; *** — p < 0,001.
Fig. 7. Adhesion of stimulated HMC-1 mast cells to intact or TNF-activated fibroblasts
Note: white bars — adhesion of HMC-1 cells to intact fibroblasts; gray bars — adhesion to fibroblasts activated with TNF (10 ng/ml). Abscissa — mast cell activators and their concentrations; ordinate — stimulation index. Differences from control are significant: ** — p < 0.01; *** — p < 0.001.
Стимуляция ТК агрегированным IgG (aIgG) в концентрациях 10 и 50 мкг/мл также индуцировала усиление адгезии к фибробластам (Фб). В обоих случаях прирост адгезивной активности составлял приблизительно 60 % по сравнению с контролем.
Для имитации воспалительного процесса в тканях была применена раздельная стимуляция клеточных культур: фибробласты обрабатывали TNF в концентрации 10 нг/ мл; а ТК инкубировали с CRP (10 или 50 мкг/мл), aIgG (аналогичные дозы) или TNF (10 нг/ мл). Результаты показали, что CRP и aIgG усиливали адгезию ТК к фибробластам, причем взаимодействие с TNF-активированными Фб происходило значимо интенсивнее, чем с интактными клетками. По отношению к контролю CRP в концентрации 10 мкг/мл повышал показатель на 14 %, а 50 мкг/мл — на 38 %; aIgG в дозах 10 и 50 мкг/мл увеличивал адгезию на 65 и 49 % соответственно.
Сравнение с базовым уровнем (интактные ТК + интактные Фб) продемонстрировало, что стимуляция CRP в дозе 10 мкг/мл усиливала адгезию к TNF-активированным Фб на 42 %, а в дозе 50 мкг/мл — на 73 %. Обработка aIgG (10 и 50 мкг/мл) вызывала увеличение адгезии на 120 и 100 % соответственно. Совместное воздействие TNF на фибробласты и лигандов FcγR на ТК проявляло аддитивный эффект, приводя к дополнительному 20%-ному усилению адгезии по сравнению с интактными Фб.
На основании результатов предыдущих экспериментов проведен анализ влияния CRP и aIgG на экспрессию адгезивных молекул CD11b (интегрин) и CD54 (ICAM-1) на поверхности тучных клеток НМС-1. Результаты продемонстрировали отсутствие значимых изменений в уровне экспрессии данных маркеров при инкубации клеток с CRP (10—50 мкг/мл) или aIgG (аналогичные концентрации) в течение заданного времени (рис. 8, а, б, г, д). В отличие от этого стимуляция TNF вызывала статистически значимое увеличение экспрессии CD54 на мембране ТК НМС-1 (рис. 8, в).
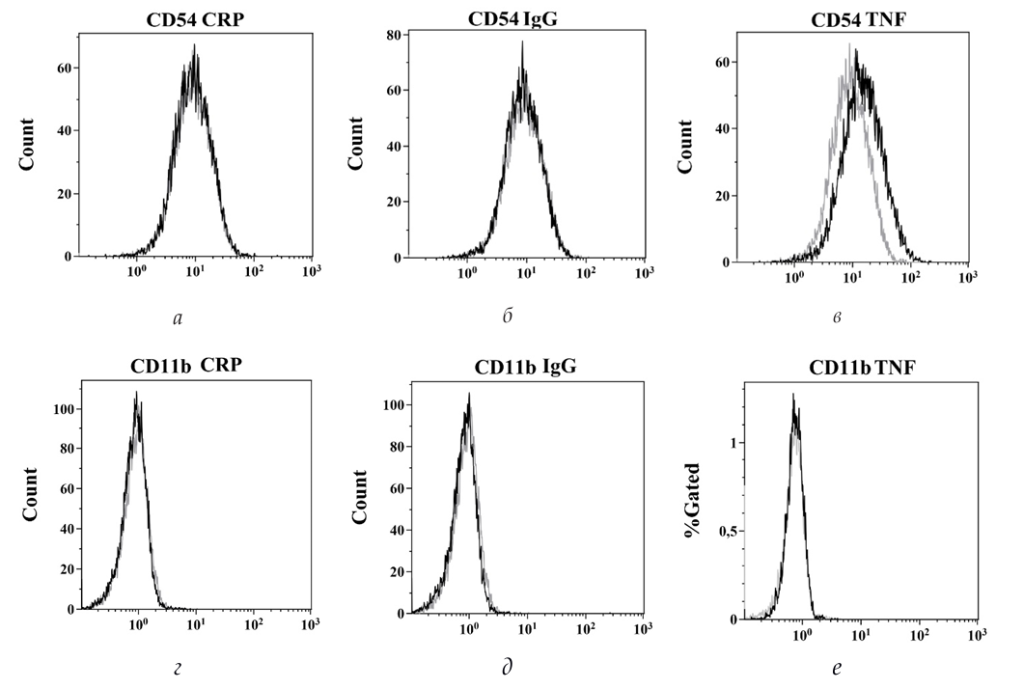
Рис. 8. Экспрессия CD54 и CD11b клетками НМС-1 при стимуляции CRP, aIgG, TNF:
а, б, в — экспрессия ICAM-1 клетками НМС-1 под действием CRP (а), aIgG (б), TNF (в);
г, д — экспрессия CD11b клетками при стимуляции CRP (г) или aIgG (д)
Примечание: серым цветом обозначен уровень связывания антител против ICAM-1 или CD11b интактными клетками, черным — уровень связывания антител со стимулированными клетками. По оси абсцисс — уровень флюоресценции, RFU, по оси ординат — количество клеток.
Fig. 8. Expression of CD54 and CD11b by HMC-1 cells stimulated with CRP, aIgG, and TNF:
a, b, c — ICAM-1 expression by HMC-1 cells stimulated with CRP (a), aIgG (b), and TNF (c);
d, e — CD11b expression by cells stim ulated with CRP (d) or aIgG (e)
Note: gray indicates binding of antibodies against ICAM-1 or CD11b to intact cells; black indicates binding of antibodies to stimulated cells. The abscissa shows fluorescence intensity (RFU); the ordinate shows cell count.
Сравнительный анализ гистограмм (рис. 8) подтвердил, что профили экспрессии CD54 в контрольной группе, а также при обработке CRP и aIgG полностью совпадают. В то же время активация клеток TNF приводила к выраженному сдвигу в гистограмме, указывающему на усиление экспрессии данного маркера.
6.2. Влияние С-реактивного белка и агрегированного IgG
на адгезивность фибробластов для тучных клеток линии НМС-1
Экспериментально установлено, что предварительная обработка фибробластов (Фб) CRP, несмотря на отсутствие у них Fcγ-рецепторов (раздел 3.2), индуцирует дозозависимое увеличение адгезии интактных тучных клеток НМС-1. При концентрации CRP 5 мкг/мл адгезивные показатели оставались сопоставимыми с контролем, однако повышение дозы до 10 и 50 мкг/мл вызывало усиление прикрепления ТК на 11 и 123 % соответственно (p < 0,05) (рис. 9). В отличие от CRP инкубация Фб с агрегированным IgG (aIgG) в аналогичных концентрациях (10—50 мкг/мл) не приводила к статистически значимым изменениям адгезии (рис. 10).
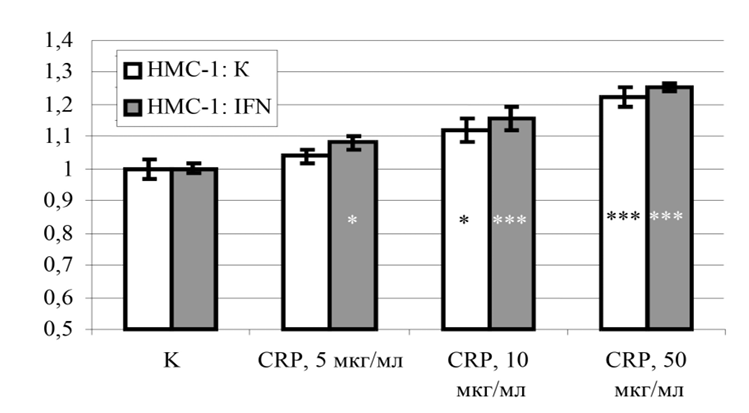
Рис. 9. Адгезия тучных клеток линии НМС-1 к фибробластам, обработанным CRP.
Роль активации клеток НМС-1 IFNγ
Примечание: по оси абсцисс — концентрация CRP, К — контроль (без обработки CRP). По оси ординат — индекс стимуляции. Белые столбцы — интактные ТК, серые — ТК, стимулированные IFNγ в течение 24 ч. Различия с контролем достоверны: * — p < 0,05; *** — p < 0,001.
Fig. 9. Adhesion of HMC-1 mast cells to fibroblasts treated with CRP. Role
of HMC-1 cell activation by IFNγ
Note: the x-axis shows CRP concentration; K is the control (without CRP treatment).
The y-axis shows the stimulation index. White bars — intact MCs; gray bars — MCs stimulated with IFNγ for 24 hours. Differences from control are significant: * — p < 0.05; *** — p < 0.001.
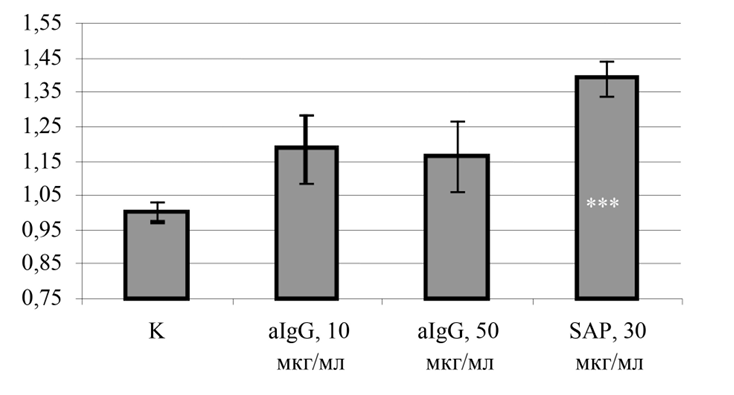
Рис. 10. Адгезия тучных клеток линии НМС-1 к фибробластам,
обработанным aIgG или SAP
Примечание: по оси ординат — индекс стимуляции; *** — различия с контролем достоверны, p < 0,001.
Fig. 10. Adhesion of HMC-1 mast cells to fibroblasts treated with aIgG or SAP
Note: the ordinate shows the stimulation index. *** — differences from control are significant, p < 0.001.
С учетом данных о повышении экспрессии FcγRI на ТК НМС-1 под действием IFNγ исследовано влияние CRP на адгезию активированных интерфероном клеток. Стимуляция CRP в дозах 5, 10 и 50 мкг/мл усиливала адгезию IFNγ-обработанных ТК на 8, 15 и 25 % соответственно (p < 0,05) (рис. 9). При этом IFNγ самостоятельно не влиял на адгезию ТК к Фб даже в присутствии CRP.
Результаты показали, что уже при дозе CRP 5 мкг/мл происходит достоверное усиление флюоресценции адгезировавших ТК, активированных интерфероном, на 8 % (p < 0,05). При концентрации CRP 10 мкг/мл прирост адгезии составлял уже 15 %, а при концентрации 50 мкг/мл — 25 %. Различия в эффекте CRP в концентрациях 5, 10 и 50 мкг/мл по сравнению с контролем достоверны (p < 0,05) (рис. 9).
Как видно из данных, представленных на рисунке 9, CRP способствует усилению адгезии к Фб ТК, предобработанных IFNγ. Вместе с тем сам IFNγ практически не повышает адгезивность ТК к Фб в присутствии CRP (рис. 9) Достоверно лишь то, что присутствие CRP обеспечивает более высокую адгезию. Как IFNγ не влияет на связывание ТК с CRP, так он не влияет и на адгезию ТК к обработанным C-реактивным белком фибробластам. Единственное отличие — в низкой концентрации, различия с контролем в случае IFNγ достоверны.
Таким образом, полученные данные свидетельствуют о том, что С-реактивный белок влияет не только на клетки иммунной системы, но и на фибробласты соединительной ткани, повышая их адгезивность для тучных клеток. Механизм влияния CRP на адгезивность фибробластов, скорее всего, иной, чем для тучных клеток, так как фибробласты не экспрессируют Fc-рецепторы, через которые пентраксин обычно действует на клетки. Этот механизм требует отдельного изучения и будет рассмотрен ниже.
Как видно, в отличие от интактных ТК, ТК, стимулированные IFNγ, лишь несколько сильнее взаимодействуют с Фб, стимулированными CRP. При стимуляции монослоя Фб aIgG в концентрациях 10 и 50 мкг/мл также происходило достоверное усиление адгезии к ним клеток НМС-1, стимулированных IFNγ, на 20 и 10 % соответственно. Различия между разными концентрациями aIgG достоверны (p < 0,01) (рис. 11).
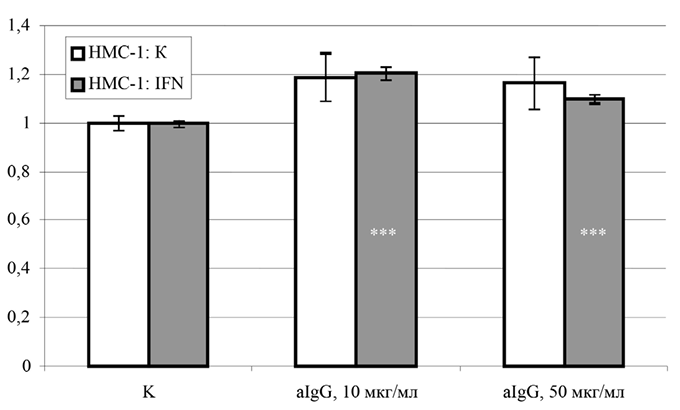
Рис. 11. Влияние aIgG на адгезивные свойства фибробластов
Примечание. К фибробластам добавляли aIgG в указанных концентрациях и инкубировали в течение суток. Затем к Фб добавляли интактные (белые столбцы) либо стимулированные 24 ч IFNγ (серые столбцы) ТК линии НМС-1. По оси ординат — индекс стимуляции; *** — различия с контролем достоверны, p < 0,001. Контроль (К) — адгезия к интактным Фб нестимулированных ТК (белый столбец) или ТК, стимулированных IFNγ (серый столбец).
Fig. 11. Effect of aIgG on the adhesive properties of fibroblasts
Note: aIgG was added to fibroblasts at the indicated concentrations and incubated for 24 hours. Intact (white bars) or 24-hour IFNγ-stimulated (gray bars) HMC-1 cells were then added to the fibroblasts. The ordinate shows the stimulation index; *** — differences from control are significant, p < 0.001. Control (C) — adhesion of unstimulated MCs (white bar) or IFNγ-stimulated MCs (gray bar) to intact fibroblasts.
Несколько иная картина наблюдалась, если перед добавлением к монослою Фб, стимулированному CRP, ТК линии HMC-1 производили «блокировку» Fcγ-рецепторов с помощью Fc-фрагментов IgG; для этого клетки HMC-1 инкубировали 20 мин на льду в ЗФР, содержащем Fc-фрагменты либо целые молекулы IgG в концентрации 25 мкг/ мл. Блокировка Fcγ-рецепторов ТК с помощью Fc-фрагментов IgG (25 мкг/мл, 20 мин, 4 °С) снижала их адгезию к CRP-стимулированным Фб до уровня спонтанного прикрепления к интактным клеткам, тогда как адгезия к TNF-активированным Фб оставалась неизменной (рис. 12, а). Аналогично предобработка IFNγ-стимулированных ТК Fc-фрагментами полностью нивелировала CRP-зависимое усиление адгезии
(рис. 12, б).
Такая же блокировка FcγR тучных клеток не оказывала влияния на их адгезию к Фб, стимулированным TNF.
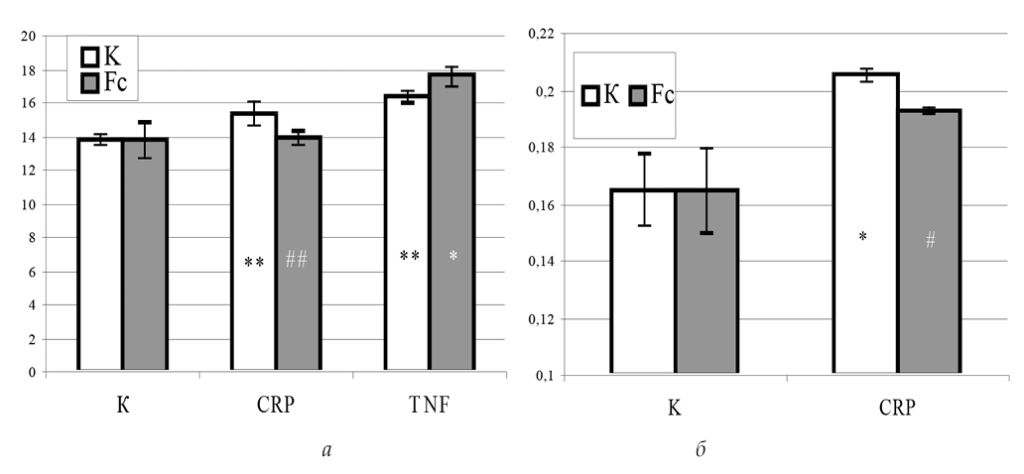
Рис. 12. Адгезия тучных клеток линии НМС-1 к фибробластам,
активированным CRP. Роль Fcγ-рецепторов клеток НМС-1
Примечание. Фибробласты были активированы CRP в концентрации 50 мкг/мл, после чего к ним были добавлены либо интактные ТК (белые столбцы), либо ТК, инкубировавшиеся с Fc-фрагментами IgG (серые столбцы): а — ТК, не стимулированные IFNγ; б — ТК НМС-1 были активированы IFNγ в течение 24 ч. По оси ординат — RFU. Достоверность различий с контролем: * — p < 0,05; *** — p < 0,001; достоверность различий между интактными ТК и ТК, обработанными Fc-фрагментами IgG: # — p < 0,05, ## — p < 0,01.
Fig. 12. Adhesion of HMC-1 mast cells to fibroblasts activated with CRP.
Role of Fcγ receptors on HMC-1 cells
Note: fibroblasts were activated with CRP at 50 μg/ml, after which either intact MCs (white bars) or MCs pre-incubated with IgG Fc fragments (gray bars) were added: a — MCs not stimulated with IFNγ; b — HMC-1 MCs activated with IFNγ for 24 hours. The ordinate shows RFU. Significance of differences from control: * — p < 0.05; *** — p < 0.001; significance of differences between intact MCs and MCs treated with IgG Fc fragments: # — p < 0.05, ## — p < 0.01.
6.3. Влияние С-реактивного белка на адгезию тучных клеток
линии HMC-1 к фибробластам в его присутствии
В рамках исследования изучали воздействие С-реактивного белка и агрегированного IgG на процесс адгезии тучных клеток линии HMC-1 к фибробластам в их присутствии. В отличие от стандартного протокола С-реактивным белком не стимулировали исследуемые клеточные популяции заранее, а вводили непосредственно в смесь взаимодействующих клеток на весь период их совместного культивирования.
Экспериментальные данные выявили, что добавление CRP в концентрации 50 мкг/ мл в среду кокультивирования приводило к усилению адгезии тучных клеток к фибробластам. Наблюдалась четкая зависимость уровня адгезии от длительности инкубации: в интервале от 20 до 50 мин количество прикрепившихся клеток возрастало. Динамика процесса демонстрировала пик активности в первые 30 мин. Через 20 мин после начала инкубации флуоресценция, характеризующая адгезию, увеличивалась на 25 % относительно контрольных образцов (без CRP). Максимальный эффект регистрировали через 30 мин, когда количество присоединившихся клеток достигало 186 % от контроля, что соответствовало 86%-ному повышению. Однако при дальнейшем увеличении времени кокультивирования различия между опытными и контрольными группами снижались: через 40 мин разница составляла 22 %, через 50 мин — лишь 11 % (рис. 13).
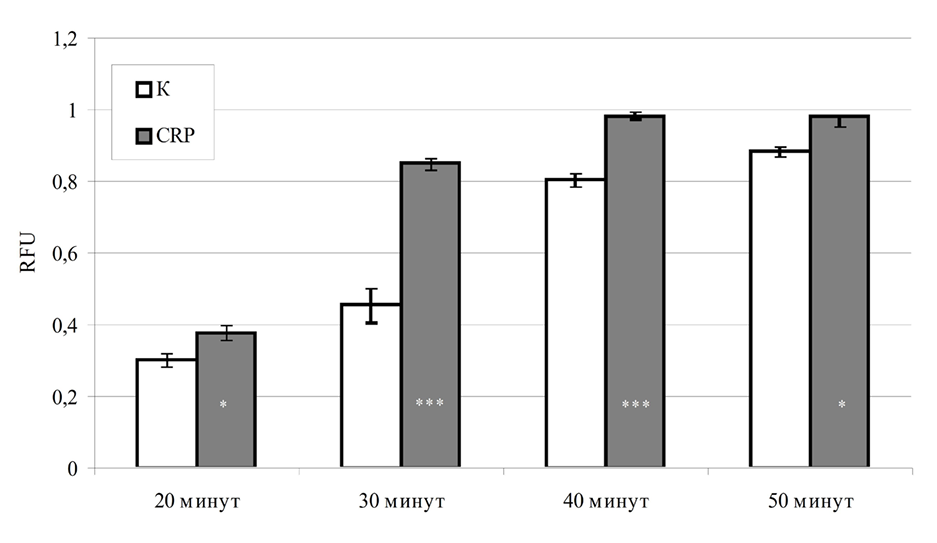
Рис. 13. Адгезия тучных клеток линии НМС-1 к Фб при кокультивировании смеси клеток в присутствии С-реактивного белка. Зависимость от времени
Примечание: белые столбцы — спонтанная адгезия тучных клеток к Фб; серые — адгезия в присутствии CRP, 50 мкг/мл. Достоверность различий с контролем: * — p < 0,05, *** — p < 0,001.
Fig. 13. Adhesion of HMC-1 mast cells to Fb during co-culture of a cell mixture in the presence of C-reactive protein. Time dependence
Note: white bars — spontaneous adhesion of mast cells to Fb; gray bars — adhesion in the presence of CRP, 50 μg/ml. Significance of differences from control: * — p < 0.05, *** — p < 0.001.
6.4. Влияние С-реактивного белка на адгезивность эндотелиальных клеток линии EA.hy926 для тучных клеток линии НМС-1
Эксперименты продемонстрировали, что активация эндотелиальных клеток линии EA.hy926 С-реактивным белком (CRP) вызывала усиление адгезии тучных клеток HMC- 1. Эффект CRP коррелировал с дозой: при концентрации 10 мкг/мл адгезивная активность увеличивалась на 50 %, а при 50 мкг/мл достигала 80 % относительно контроля (нестимулированные эндотелиальные клетки). Статистический анализ подтвердил значимость различий между воздействием CRP в указанных концентрациях (p < 0,05) (рис. 14).
Аналогичное усиление адгезии фиксировалось при стимуляции эндотелия агрегированным IgG (aIgG). При концентрации 10 мкг/мл aIgG интенсивность флуоресценции, отражающая количество прикрепившихся тучных клеток, возрастала на 60 %, а при 50 мкг/мл — на 43 %. Оба значения достоверно отличались от негативного контроля (адгезия к интактному эндотелию, p < 0,05), однако различия между группами, обработанными разными дозами aIgG, не достигали статистической значимости (p > 0,05) (рис. 14).
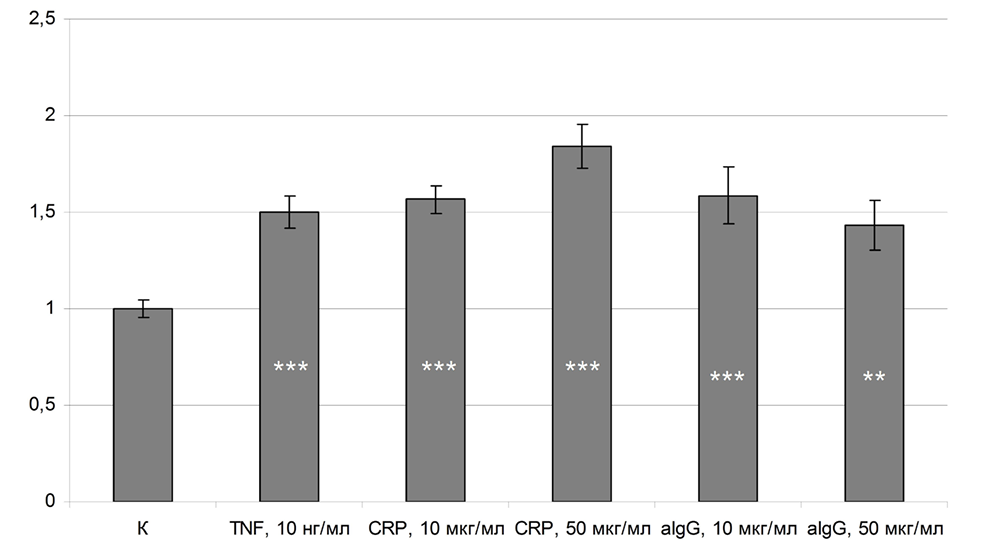
Рис. 14. Влияние С-реактивного белка и агрегированного IgG на адгезивные свойства эндотелия линии EA.hy926 для тучных клеток НМС-1
Примечание. По оси ординат — индекс стимуляции. Различия с контролем достоверны: ** — < 0,01, *** — p < 0,001.
Fig. 14. Effect of C-reactive protein and aggregated IgG on the adhesive properties of EA.hy926 endothelium for HMC-1 mast cells
Note: the ordinate shows the stimulation index. Differences from control are significant: ** — p < 0.01, *** — p < 0.001.
Кроме того, в экспериментальных условиях адгезия тучных клеток HMC-1 к эндотелию, активированному провоспалительным цитокином TNF-α (10 нг/ мл), повышалась в 1,5 раза по сравнению с контролем (рис. 14).
7. Влияние С-реактивного белка на активацию транскрипционного фактора NF-κB в тучных клетках линии HMC-1
Клетки НМС-1, трансфецированные плазмидой pNF-κBluc, реагировали на стимуляцию CRP синтезом люциферазы — люминесценция в клетках, стимулированных CRP, увеличивалась на 40 % по сравнению с контрольными (рис. 15).
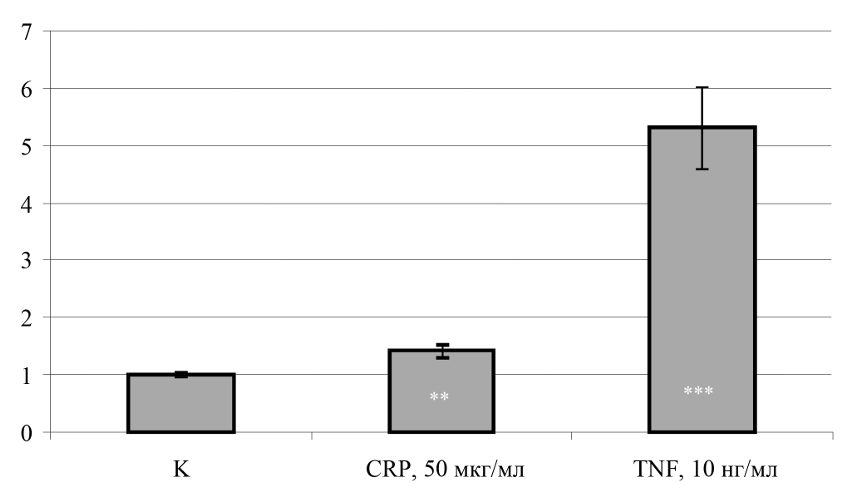
Рис. 15. Влияние C-реактивного белка человека на экспрессию репортерного гена люциферазы, находящегося под промотором NF-κB в клетках НМС-1, трансфецированных конструкцией pNF-κBluc
Примечание. По оси ординат — интенсивность люминесценции люциферазы в условных единицах (RLU); ** — различия с контролем достоверны, p < 0,01; *** — различия с контролем достоверны, p < 0,001.
Fig. 15. Effect of human C-reactive protein on expression of the luciferase reporter gene driven by the NF-κB promoter in HMC-1 cells transfected with the pNF-κBluc construct
Note: the ordinate shows luciferase luminescence intensity in relative luminescence units (RLU); ** — differences from control are significant, p < 0.01; *** — differences from control are significant, p < 0.001.
Обсуждение
Результаты исследования подтверждают, что тучные клетки линии HMC-1 экспрессируют низкоаффинные Fcγ-рецепторы CD32 (FcγRII). Согласно литературным данным, интактные человеческие ТК, полученные из CD34+ клеток крови, также экспрессируют CD32, но содержат минимальное количество мРНК CD64 (FcγRI) и CD16 (FcγRIII) в цитоплазме. При стимуляции интерфероном-γ (IFNγ) наблюдается индукция высокоаффинного FcγRI (CD64), тогда как экспрессия низкоаффинных рецепторов остается неизменной [11]. Наши данные согласуются с этим: интактные ТК линии HMC-1 демонстрируют базальную экспрессию CD64, которая усиливается под действием IFNγ. Максимальная экспрессия FcγRI регистрировалась через 24 ч после стимуляции, после чего ее уровень снижался.
Стоит отметить, что в ряде исследований утверждается, что единственным Fcγ-рецептором на ТК HMC-1 является CD32 [12]. В наших экспериментах мы не имели возможности использовать антитела, которые позволяли бы различать подтипы FcγRII — CD32a, CD32b и CD32c, поэтому мы не можем с уверенностью утверждать, какой из подтипов CD32 экспрессируется на ТК линии НМС-1. Ингибирующий рецептор CD32b, возможно, отсутствует на ТК человека, в отличие от базофилов крови. На ТК мышей, напротив, CD32b экспрессируется, причем его активация генерирует ингибиторный сигнал и ингибирует активацию, вызванную агрегацией FcεRI (высокоаффинного рецептора для IgE) [13]. В наших экспериментах как aIgG, так и CRP в основном активировали ТК и во всяком случае не оказывали подавляющего действия ни на одну из функций ТК, поэтому мы говорим о том, что aIgG и CRP взаимодействуют с активирующим, а не ингибирующим Fcγ-рецептором.
Эксперименты выявили дозозависимое связывание CRP на поверхности ТК. Интересно, что связывание усиливалось в отсутствие Ca2+ и Mg2+. CRP, будучи кальций-зависимым белком, меняет конформацию при насыщении ионами Ca2+, что регулирует его взаимодействие с лигандами. Например, связывание с фосфорилхолином требует Ca2+, тогда как взаимодействие с поликатионами/полианионами подавляется [10]. Это позволяет предположить, что CRP связывается с Fcγ-рецепторами через участки, не связанные с фосфорилхолин-специфичными сайтами.
Интересно, что связывание усиливалось в отсутствие Ca2+ и Mg2+. Из литературных данных известно, что CRP, будучи кальций-зависимым белком, меняет конформацию при насыщении ионами Ca2+, что регулирует его взаимодействие с лигандами [10]. Показано, что ионы кальция регулируют взаимодействие молекулы CRP с разными лигандами, переключают специфичность пентраксина с одного лиганда на другой. Так, например, для взаимодействия CRP с фосфорилхолин (ФХ)-содержащими лигандами (пневмококковым полисахаридом С и т. п.) насыщение молекулы CRP ионами кальция необходимо, оно ведет к открытию ФХ-специфичных сайтов, вместе с тем открывается площадка для посадки C1q. Поэтому молекула CRP, связавшая ФХ-содержащий лиганд, привлекает C1q и активирует комплемент по классическому пути. В то же время связывание пентраксином лигандов другого типа, таких как поликатионы и полианионы (например, гистонов, полирибонуклеотидов), напротив, тормозится ионами кальция. При насыщении молекулы CRP кальцием взаимодействие с лигандами этого типа блокируется вследствие того, что заряженные пептидные участки CRP, ответственные за контакт с поликатионами и полианионами, перестают экспонироваться на поверхности молекулы. Взаимодействие CRP с поликатионами/полианионами не сопровождается и активацией комплемента. Принимая во внимание регулирующую роль ионов кальция в экспонировании ФХ-связывающих и заряженных сайтов CRP, можно заключить, что CRP связывается с Fcγ-рецепторами через участки, не связанные с фосфорилхолин-специфичными сайтами, и что связывание, скорее всего, осуществляется обратной стороной молекулы CRP, на которой расположены кластеры заряженных аминокислотных остатков [10].
Разрешающая способность метода позволяла зафиксировать связывание CRP, меченого биотином, c ТК, начиная с 12,5 мкг/мл (проточная цитометрия, стрептавидин, конъюгированный с АРС). При концентрации CRP выше 100 мкг/ мл дальнейшего усиления связывания с тучными клетками не происходило, что, скорее всего, обусловлено насыщением рецепторов на клетках, способных взаимодействовать с CRP. В присутствии как не меченого биотином CRP, так как и IgG связывание С-реактивного белка с клетками снижалось, что говорит о специфичности связывания и об общем рецепторе для CRP и aIgG на тучных клетках (см. рис. 6, в, г).
Несмотря на то что IFNγ вызывал усиление экспрессии FcγRI на ТК, он не оказывал влияния на связывание CRP с ТК. Возможно, это можно объяснить тем, что FcγRII представлен на клетках в большем количестве (см. рис. 2) и усиление экспрессии FcγRI проявляется несущественным изменением связывания CRP при измерении с помощью проточной цитометрии.
Показано, что стимуляция FcγRII тучных клеток человека не приводит к выходу гистамина из человеческих ТК. Кроме того, показано, что стимуляция НМС-1 aIgG не приводит к выходу TNF [12].
Таким образом, в норме FcγRII является единственным рецептором к иммуноглобулину G на тучных клетках человека, а значит, стимуляция ТК IgG не приводит к дегрануляции совсем либо вызывает ее в малой степени. Известно, что после стимуляции IFNγ ТК приобретают способность отвечать на IgG [14]. Наши данные не противоречат этому. Так, интактные клетки НМС-1 не отвечали на добавление в среду CRP достоверным выходом гистамина. Но если клетки были активированы сутки IFNγ, то в ответ на стимуляцию CRP наблюдался выход гистамина. По данным литературы концентрация aIgG, при которой степень дегрануляции ТК максимальна, — 1 мкг/мл [14]. В наших экспериментах наибольший выход гистамина наблюдался при стимуляции CRP в концентрации 3 мкг/мл, то есть при концентрации CRP того же порядка.
ТК способны к дегрануляции не только при агрегации FcεRI, но и при агрегации CD64 (FcγRI). FcγRI-зависимая дегрануляция может быть вызвана не только действием антител к рецептору, но и при добавлении aIgG, а также при предварительной «сенсибилизации» человеческим иммуноглобулином IgG1 с последующим добавлением мышиных антител против человеческого IgG1 [14]. Интересно заметить, что подклассы IgG2 и IgG3 с соответствующими антителами анти-IgG не обладали способностью вызывать дегрануляцию ТК. Особенно интересно, что IgG3 не обладал способностью вызывать дегрануляцию ТК, стимулированных IFNγ, хотя этот подкласс имеет сродство к FcγRI, сравнимое с IgG1. Высвобождение гистамина из ТК под действием IgG4/ анти-IgG4 имело место, но было на порядок слабее, чем в случае IgG/IgG1 [14].
Из литературы известно о дегрануляции ТК в пораженных участках ткани при наличии отложения иммунных комплексов. Активированные ТК были обнаружены, например, в воспаленной синовиальной оболочке у больных ревматоидным артритом и склеродермией, в депозитах при васкулите IgG [14]. Известно, что для ряда бактериальных и вирусных инфекций характерно повышенное содержание IFNγ в тканях [15]. Становится ясен механизм, посредством которого происходит вовлечение ТК в патогенез таких заболеваний. Например, при псориазе в местах поражения наблюдается повышенное содержание IFNγ и ТК [16]. Кроме того, показано, что на этих клетках экспрессируются FcγRI [17]. Возможно, что таким образом ТК участвуют в поражении тканей, при которых показана патологическая роль ТК, а также повышенное содержание иммунных комплексов и CRP, например при псориазе [16] и ревматоидном артрите [18].
Таким образом, антиген-зависимый ответ ТК возможен не только при Th2-ассоциированном иммунном ответе, когда под действием IL-4 и IL-13 происходит синтез иммуноглобулинов класса IgE, но и при Th1-ответе, при котором секретируется IFNγ, вызывающий повышение экспрессии CD64 на клетках и синтез Ig G.
Как показали наши опыты, CRP и aIgG в концентрациях 10 и 50 мкг/мл оказывали стимулирующее действие на адгезивные свойства тучных клеток. Из литературных данных видно, что для С-реактивного белка характерно проявление провоспалительной активности [10]. Кроме того, показано, что агрегация Fcγ-рецепторов на поверхности мышиных тучных клеток приводит к усилению их адгезии к фибронектину [19].
Известно, что ТК всегда присутствуют в фиброзной ткани и что с ними связано развитие фиброза, однако механизмы, связывающие ТК с фиброзом, изучены недостаточно. Показано, что ТК стимулируют профибротические виды активности фибробластов путем образования контактов с фибробластами, активации их пролиферации и контракции коллагеновой сети [20]. ТК влияют на экспрессию на фибробластах рецепторов гистамина, серотонина, TNF, триптазы, а также на выброс фибробластами хемокинов CCL8, CCL13, CXCL4 и CXCL6 [20].
Как показали наши опыты, при стимуляции фибробластов С-реактивным белком все же происходит некоторое усиление адгезии к ним тучных клеток (см. рис. 9), несмотря на отсутствие на фибробластах рецепторов к CRP (то есть Fcγ-рецепторов). Как известно, растущие в культуре фибробласты продуцируют белки матрикса, создавая вокруг себя белковое микроокружение. У CRP имеются сайты связывания с различными белками матрикса соединительной ткани, в частности с фибронектином и ламинином [9; 10]. На обратной же стороне молекулы CRP находятся сайты связывания с Fcγ-рецепторами [10]. В связи с этим мы предположили, что в случае предынкубации фибробластов с CRP этот пентраксин может способствовать их адгезии с тучными клетками не прямо, то есть не путем непосредственного связывания с фибробластами и их активации, а косвенно — связываясь с компонентами межклеточного матрикса (фибронектином и другими белками). Когда же происходит добавление тучных клеток, то они, в свою очередь, связываются своими FcγR с CRP, ассоциированным с матриксом, и таким образом происходит усиление адгезии. Это предположение согласуется с тем, что ответственные за контакт с белками матрикса фибронектином и ламинином сайты CRP — это ФХ-специфичные сайты, расположенные на одной поверхности плоской дискоидной молекулы CRP, а сайты связывания с Fcγ-рецепторами — на другой [10].
Это подтверждается результатом следующего эксперимента. ТК перед добавлением к Фб, инкубировавшимся с CRP в концентрации 50 мкг/мл (или с TNF в концентрации 10 нг/мл) в течение суток, обработали Fc-фрагментами иммуноглобулина класса G, чтобы «блокировать» на них Fcγ R. Адгезия обработанных Fc-фрагментами тучных клеток к фибробластам, активированным CRP, была достоверно ниже по сравнению с адгезией ТК с незаблокированными Fcγ-рецепторами и была на уровне адгезии интактных ТК к необработанным фибробластам, тогда как на степень прикрепления ТК к Фб, активированным TNF, блокировка Fcγ-рецепторов ТК не влияла (см. рис. 12).
Если CRP выступает в адгезии ТК к Фб в качестве якоря, то можно было предположить, что, если инкубацию Фб с ТК проводить в присутствии CRP, то интенсивность адгезии ТК к Фб повысится. И действительно, при совместной инкубации ТК и Фб в присутствии CRP наличие в среде CRP приводило к достоверному увеличению степени адгезии (см. рис. 13).
Таким образом, было подтверждено предположение, что С-реактивный белок не активизирует фибробласты, а, скорее, является якорем для ТК в матриксе соединительной ткани. В литературе было описано, что мембранная форма CRP, экспрессируемая человеческими моноцитами, способна выполнять функцию молекулы клеточной адгезии, участвуя во взаимодействии моноцитов и фибронектина [21]. Известно также, что связывание CRP c фибронектином препятствует связыванию Фб с фибронектином, и это ингибирование Са2+-зависимо [10]. Зависимость такого ингибирования от ионов Са2+ говорит о том, что CRP связывается с фибронектином своим эпитопом, отвечающим за взаимодействие с ФХ (ингибирование фосфорилхолином связывания CRP с фибронектином продемонстрировано в той же работе), сайт связывания с Fcγ-рецепторами располагается на обратной стороне, но на Фб Fcγ-рецепторы отсутствуют, поэтому происходит ингибиция адгезии Фб на фибронектин. В это же время клетки, экспрессирующие на своей поверхности Fcγ-рецепторы, по нашим данным, наоборот, в присутствии CRP активнее адгезируют к белкам внеклеточного матрикса (рис. 16).
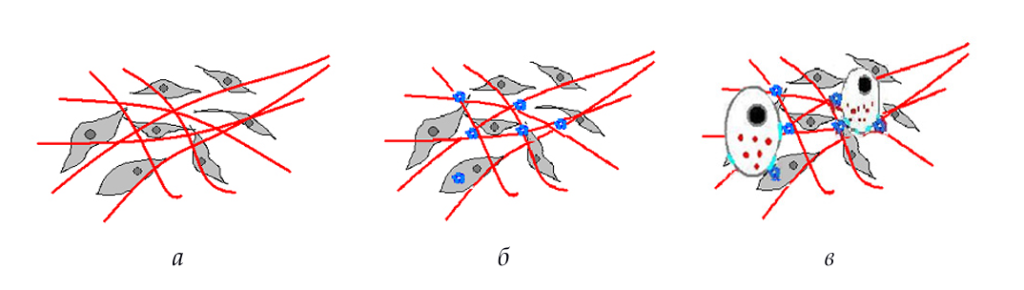
Рис. 16. Стимуляция CRP-адгезии клеток к межклеточному матриксу:
а — фибробласты и синтезированный ими внеклеточный матрикс;
б — CRP связался с белками (например, фибронектином и ламинином) межклеточного матрикса стороной, на которой располагаются сайты
Са2+-зависимого связывания с лигандами; в — клетки, взаимодействуя
с CRP при помощи FcγR, заякориваются в тканях
Fig. 16. CRP stimulation of cell adhesion to the extracellular matrix:
a — fibroblasts and the extracellular matrix they synthesize; b — CRP bound to extracellular matrix proteins (e. g., fibronectin and laminin) via the face bearing the Ca²⁺-dependent ligand-binding sites; c — cells interacting with CRP via FcγR anchor themselves in tissue.
В литературе показано, что CRP индуцирует активацию NF-κB в культуре мезангиальных клеток почечных клубочков человека. В концентрациях 12,5–100 мкг/мл CRP дозозависимо повышал способность NF-κB связываться с ДНК в ядре с максимумом через 3 ч после инкубации клеток с CRP in vitro. Инкубация мезангиальных клеток с CRP усиливала также NF-κB-зависимый процесс экспрессии мРНК макрофагального хемотактического протеина-1 (MCP-1). Также под влиянием CRP возрастала внутриклеточная концентрация кальция и образование реактивных форм кислорода [22].
В исследованиях, посвященных изучению роли CRP в атерогенезе и развитии сердечно-сосудистых осложнений, показано, что CRP действует на клетки сосудистой стенки как провоспалительный индуктор, активирующий эндотелиальные клетки к приобретению так называемого воспалительного фенотипа и проатерогенных свойств. В частности, установлено, что его провоспалительное действие в отношении эндотелиальных клеток проявляется в усилении экспрессии адгезионных молекул VCAM-1 и CD40, обеспечивающих приток и прикрепление лейкоцитов к стенке сосуда. CRP стимулировал экспрессию мРНК VCAM-1, синтез и экспрессию молекулы VCAM-1, а также экспрессию CD40 и активировал промотор гена VCAM-1, причем эти эффекты CRP происходили при участии протеинкиназы С, митогенактивируемой протеинкиназы р38MAPK, тирозинкиназы и транскрипционного фактора NF-κB. Ингибиторы перечисленных киназ и ингибиторы NF-κB (партенолид, пирролидинтиокарбамат) отменяли индукцию VCAM-1 С-реактивным белком [23].
Показано, что активирующее действие CRP на экспрессию адгезионной молекулы VCAM-1 эндотелиальными клетками аорты in vitro, опосредуемое через активацию фактора NF-κB, происходит при участии Fcγ-рецепторов II типа. Это было подтверждено путем ингибиции мРНК CD32 с помощью нескольких сайленс-РНК, направленных против участка мРНК CD32 длиной 21 нуклеотид. Клетки, инкубированные с сайленс-РНК, не экспрессировали CD32 и не отвечали усилением экспрессии VCAM-1 на стимуляцию С-реактивным белком [23].
NF-κB-зависимый путь включается и при активации клеток другими лигандами Fc-рецепторов, в частности их классическим лигандом — иммуноглобулинами класса Ig G. Так, показано, что в дендритных клетках человека, полученных из моноцитов крови, активация Fcγ-рецепторов II типа (FcγRII, CD32) агрегированным (иммобилизованным) IgG индуцирует дифференцировку и синтез цитокинов (IL-10), а также вызывает появление способности индуцировать пролиферацию аллогенных Т-клеток. Эти реакции дендритных клеток на сшивку FcγRII происходят при участии NF-κB-зависимого пути, с перемещением белков NF-κB p65 и c-Rel из цитоплазмы в ядро. Ответ дендритных клеток на IgG отменялся в присутствии блокирующих антител против CD32 [24].
Показано, что стимуляция С-реактивным белком приводит к усилению адгезивных свойств тучных клеток и клеток эндотелия (см. рис. 7, 14, табл. 3). Как видно из наших данных (см. рис. 1, г) и данных литературы, у С-реактивного белка и aIgG одни и те же рецепторы — FcγR I и II типов [25]. Результаты наших экспериментов также показали стимулирующее влияние aIgG на адгезию клеток. Таким образом, можно сделать заключение, что активация FcγRII приводит к запуску сигнального каскада, результатом которого является активация генов, отвечающих за адгезию клеток друг к другу или к иным субстратам, например к белкам матрикса соединительной ткани. Подобное действие CRP, в частности, было показано на эндотелиальных клетках, выделенных из орты [25]. Кроме того, авторы показали, что при выключении гена CD32 при помощи siRNA происходит снижение адгезивных свойств клеток эндотелия относительно интактных клеток, обработанных CRP. Такого же эффекта авторы достигали при добавлении в среду к эндотелиальным клеткам блокирующих антител против CD32 или против CD64.
Таблица 3
Влияние С-реактивного белка и агрегированного IgG на адгезию клеток исследуемых линий (степень усиления по сравнению с контролем), %
Table 3
Effect of C-reactive protein and aggregated IgG on the adhesion of the studied cell lines (percentage increase relative to control), %
Обработаны CRP или aIgG | Не обработаны ничем | CRP | аIgG |
НМС-1 | Фибробласты | 54 | 60 |
EA.hy926 | НМС-1 | 80 | 43 |
Примечание: CRP и aIgG использованы в концентрации 50 мкг/мл. Контроль — уровень адгезии при использовании соответствующей пары необработанных клеток.
Note: CRP and aIgG were used at a concentration of 50 μg/ml. Control: adhesion level for the corresponding pair of untreated cells.
Таким образом, наши опыты продемонстрировали, что основными рецепторами для CRP на эндотелиальных клетках EA.hy926 (как и на эндотелиальных клетках, выделенных из аорты или пупочной вены, что известно из литературы), а также на тучных клетках НМС-1 служат рецепторы к иммуноглобулину класса G — низкоаффинные FcγRI I.
Кроме того, действуя на FcγR ТК, CRP вызывает цепь внутриклеточных процессов, результатом которых является изменение их адгезивных свойств, не связанное с усилением экспрессии адгезионных молекул CD54 и СD11b, следовательно, механизм усиления адгезивности ТК под действием CRP и aIgG еще требует дальнейшего изучения.
Высокоаффинный рецептор FcγRI также выступает рецептором для CRP на иммунокомпетентных клетках, но в отличие от FcγRII, экспрессируемого практически всеми клетками гемопоэтического происхождения и эндотелием, представлен только на моноцитах и макрофагах, а после стимуляции IFNγ тучные клетки так же начинают его экспрессировать. При этом стимуляция ТК линии НМС-1 IFNγ приводит к экспрессии CD64, активация которого CRP приводит к дегрануляции ТК.
Список литературы
- Crivellato E., Ribatti D. The mast cell: an evolutionary perspective. Biol. Rev. Camb. Philos. Soc. 2010, 85(2), 347—360, DOI: 10.1111/j.1469-185x.2009.00105.x.
- Rivellese F., Rossi F. W., Galdiero M. R., Pitzalis C., de Paulis A. Mast Cells in Early Rheumatoid Arthritis. Int. J. Mol. Sci. 2019, 20(8), 2040, DOI: 10.3390/ijms20082040.
- Ribatti D., Tamma R., Annese T. Mast cells and angiogenesis in multiple sclerosis. Inflamm. Res. 2020, 69(11), 1103—1110, DOI: 10.1007/s00011-020-01394-2.
- Conti P., Caraffa A., Mastrangelo F., Tettamanti L., Ronconi G., Frydas I., et al. Critical role of inflammatory mast cell in fibrosis: Potential therapeutic effect of IL-37. Cell Prolif. 2018, 51(5), e12475, DOI: 10.1111/cpr.12475.
- Weber A., Knop J., Maurer M. Pattern analysis of human cutaneous mast cell populations by total body surface mapping. British Journal of Dermatology. 2003, 148(2), 224—228, DOI: 10.1046/j.1365-2133.2003.05090.x.
- Huttenlocher A., Sandborg R. R., Horwitz A. F. Adhesion in cell migration. Curr. Opin. Cell Biol. 1995, 7(5), 697—706, DOI: 10.1016/0955-0674(95)80112-x.
- Dileepan K. N., Raveendran V. V., Sharma R., Abraham H., Barua R., Singh V., et al. Mast cell-mediated immune regulation in health and disease. Front. Med. 2023, 10, 1213320, DOI: 10.3389/fmed.2023.1213320.
- Ma Y. J., Parente R., Zhong H., Sun Y., Garlanda C., Doni A. Complement-pentraxins synergy: Navigating the immune battlefield and beyond. Biomed. Pharmacother. 2023, 169, 115878, DOI: 10.1016/j.biopha.2023.115878.
- Singh B., Goyal A., Patel B. C. C-Reactive Protein: Clinical Relevance and Interpretation. In: StatPearls [Internet]. StatPearls Publishing; 2025.
- Назаров П. Г. Реактанты острой фазы воспаления. Наука, 2001, ISBN 5-02-026122-Х.
- Okayama Y., Kirshenbaum A. S., Metcalfe D. D. Expression of a functional high-affinity IgG receptor, Fc gamma RI, on human mast cells: up-regulation by IFN-gamma. The Journal of Immunology. 2000, 164(8), 4332–4339, DOI: 10.4049/jimmunol.164.8.4332.
- Wedi B., Lewrick H., Butterfield J. H., Kapp A. Human HMC-1 mast cells exclusively express the Fc gamma RII subtype of IgG receptor. Arch. Dermatol. Res. 1996, 289(1), 21—27, DOI: 10.1007/s004030050147.
- Kanagaratham C., Derakhshan T., El Ansari Y. S., Furiness K. N., Hollers E., Keldsen M., et al., IgG:FcγRIIb signals block effector programs of IgE:FcεRI-activated mast cells but spare survival pathways. J. Allergy Clin. Immunol. 2023, 152(2), 453—468, DOI: 10.1016/j.jaci.2023.03.027.
- Woolhiser M. R., Okayama Y., Gilfillan A. M., Metcalfe D. D. IgG-dependent activation of human mast cells following up-regulation of Fc gamma RI by IFN-gamma. Eur. J. Immunol. 2001, 31(11), 3298—3307, DOI: 10.1002/1521-4141(200111)31:11 < 3298::aid-immu3298 > 3.0.co;2-u.
- Jouanguy E., Doffinger R., Dupuis S., Pallier A., Altare F., Casanova J. L. IL-12 and IFN-gamma in host defense against mycobacteria and salmonella in mice and men. Curr. Opin. Immunol. 1999, 11(3), 346—351, DOI: 10.1016/s0952-7915(99)80055-7.
- Sieminska I., Pieniawska M., Grzywa T. M. The Immunology of Psoriasis-Current Concepts in Pathogenesis. Clin. Rev. Allergy Immunol. 2024, 66(2), 164—191, DOI: 10.1007/s12016-024-08991-7.
- Tkaczyk C., Okayama Y., Woolhiser M. R., Hagaman D. D., Gilfillan A. M., Metcalfe D. D. Activation of human mast cells through the high affinity IgG receptor. Mol. Immunol. 2002, 38(16—18), 1289—1293, DOI: 10.1016/s0161-5890(02)00077-9.
- Pope J. E., Choy E. H. C-reactive protein and implications in rheumatoid arthritis and associated comorbidities. Semin. Arthritis Rheum. 2021, 51(1), 219—229, DOI: 10.1016/j.semarthrit.2020.11.005.
- Pastwińska J., Walczak-Drzewiecka A., Łukasiak M., Ratajewski M., Dastych J. Hypoxia regulates human mast cell adhesion to fibronectin via the PI3K/AKT signaling pathway. Cell Adh. Migr. 2020, 14(1), 106—117, DOI: 10.1080/19336918.2020.1764690.
- Foley T. T., Saggers G. C., Moyer K. E., Ehrlich H. P. Rat mast cells enhance fibroblast proliferation and fibroblast-populated collagen lattice contraction through gap junctional intercellular communications. Plast. Reconstr. Surg. 2011, 127(4), 1478—1486, DOI: 10.1097/PRS.0b013e318208d0bb.
- Kolb-Bachofen V., Puchta-Teudt N., Egenhofer C. Expression of membrane-associated C-reactive protein by human monocytes: indications for a selectin-like activity participating in adhesion. Glycoconj. J. 1995, 12(2), 122–127, DOI: 10.1007/BF00731355.
- Chang J. W., Kim C. S., Kim S. B., Park S. K., Park J. S., Lee S. K. C-reactive protein induces NF- kB activation through intracellular calcium and ROS in human mesangial cells. Nephron Exp. Nephrol. 2005, 101(4), e165—172, DOI: 10.1159/000087940.
- Liang Y.-J., Shyu K.-G., Wang B.-W., Lai L.-P. C-reactive protein activates the nuclear factor-kB pathway and induces vascular cell adhesion molecule-1 expression through CD32 in human umbilical vein endothelial cells and aortic endothelial cells. J. Mol. Cell Cardiol. 2006, 40(3), 412—420, DOI: 10.1016/j.yjmcc.2005.12.008.
- Banki Z., Kacani L., Mullauer B., Wilflingseder D., Obermoser G., Niederegger H., et al. Cross-linking of CD32 induces maturation of human monocyte-derived dendritic cells via NF-kB signaling pathway. J. Immunol. 2003, 170(8), 3963—3970, DOI: 10.4049/jimmunol.170.8.3963.
- Bharadwaj D., Stein M. P., Volzer M., Mold C., Clos T. W. D. The major receptor for C-reactive protein on leukocytes is fcgamma receptor II. J. Exp. Med. 1999, 190(4), 585—590, DOI: 10.1084/jem.190.4.585.